Study on the Variation Characteristics of Photosynthetic Parameters and Environmental Influencing Factors of Populus Euphratica in Desert Riparian Forest

  • Huan LUO , 1, 2 ,
  • Jianhua SI , 1 ,
  • Chunyan ZHAO 1, 2 ,
  • Duan LI 1, 2 ,
  • Chunlin WANG 1, 2
Expand
  • 1. Northwest Institute of Eco-Environment and Resources, Chinese Academy of Sciences, Key Laboratory of Eco-hydrology of Inland River Basin, Lanzhou 730000, Gansu, China
  • 2. University of Chinese Academy of Sciences, Beijing 100049, China

Received date: 2019-05-23

  Revised date: 2019-09-15

  Online published: 2020-04-28

Highlights

Photosynthesis is the basis of primary productivity of green plants and plays an important role in plant growth.The net photosynthetic rate is not only related to the difference of plant species, but also the influence of external environment.In this study, photosynthetic physiological parameters and meteorological environmental factors of Populus euphratica in desert riparian forest of Ejina Banner were measured under the field conditions, and their variation characteristics and influencing factors were analyzed in order to reveal the limiting factors of photosynthesis of Populus euphratica and understand the drought resistance mechanism in arid desert areas.The results showed that: (1) The diurnal variation of net photosynthetic rate of Populus euphratica showed a trend of increasing first and then decreasing.The main reasons for this change was that net photosynthetic radiation increased gradually from the morning and photosynthetic rate increased accordingly.The decrease of photosynthetic rate after 14:00 (Beijing time, the same after) is due to the gradual decrease of photosynthetic active radiation and atmospheric temperature.(2) The midday depression of photosynthesis appeared between 11:00 and 13:00 in June, July and August, and the stomatal limitation value increased first and then decreased in June, July and August.The reason for the midday depression of photosynthesis in Populus euphratica is the decrease of stomatal conductance and intercellular CO2 concentration, which belongs to the stomatal limitation of photosynthesis.(3) The variation of stomatal conductance of Populus euphratica showed a periodic fluctuation pattern, in which the fluctuation period in June and July was approximately 1 hour, that in August was 2 hours, and that in September was 4 hours.(4) The transpiration rate of Populus euphratica corresponds to stomatal conductance and fluctuates periodically, its purpose is to help improve water use efficiency of Populus euphratica and to enable Populus euphratica to pass through the extremely hot and dry summer safely.

Cite this article

Huan LUO , Jianhua SI , Chunyan ZHAO , Duan LI , Chunlin WANG . Study on the Variation Characteristics of Photosynthetic Parameters and Environmental Influencing Factors of Populus Euphratica in Desert Riparian Forest[J]. Plateau Meteorology, 2020 , 39(2) : 393 -401 . DOI: 10.7522/j.issn.1000-0534.2019.00037

1 引言

荒漠河岸林胡杨(Populus euphratica Oliv)是杨柳科中最古老、 最原始的树种(Valdes et al, 2002), 也是黑河下游荒漠河岸林中常见和典型的抗干旱、 耐盐碱的重要林木树种, 具有极强的抗逆能力(Zhao et al, 2017b)。研究胡杨光合生理参数的变化及其与环境因子之间的关系可以揭示胡杨光合作用的限制因素, 弄清胡杨在极端干旱地区的抗旱机理, 对于保护当地流域的生态环境具有重要的意义。目前国内外对胡杨已经做过了一系列的研究和报道, 庄丽等(2005)分析了胡杨叶片中丙二醛和抗氧化酶等生化指标对地下水埋深变化的响应; 付爱红等(2004)研究了在干旱条件下胡杨叶片水势的变化特点; 周洪华等(2008)研究了胡杨气体交换参数的变化特征; 刘树宝等(2014)通过利用同位素方法研究了不同树龄胡杨的水分利用来源; Arshad et al(2017)通过分析胡杨异形叶和根的基因表达谱, 确定了胡杨的抗旱基因; 高冠龙等(2018)通过将冠层与大气耦合来分析了胡杨林的蒸腾特性。研究的主要方法集中在控制条件下进行, 大都以对胡杨的水分条件控制(夏振华等, 2018; 王海珍等, 2017)、 盐分控制(Zhao et al, 2017a)、 水盐复合条件控制(王利界等, 2018)以及对光照条件、 CO2浓度、 温度控制(常宗强等, 2006; 王仲礼等, 2015)等方面的研究。
植物的光合作用是构成植物生产力的关键因素(贾立等, 1994), 是植物生长过程中最重要的生理过程之一, 对生态系统中能量流动和物质循环起着重要的作用, 同时也是植物固定碳的主要途径(王玉萍等, 2013; 张新慧等, 2008)。光合作用的日变化可以反映植物在一定的天气状况下各种生理生态因子的综合效应, 分析植物光合作用的日变化特征可以揭示净光合速率与环境因子之间的关系(杜占池等, 1999), 同时光合作用的日变化也是植物生理代谢和物质积累的基本过程, 是分析环境因子与植物生长代谢之间关系的重要手段。乌日汗(2005)对额济纳旗胡杨的研究发现, 光合速率、 蒸腾速率的日变化曲线为单峰和双峰两种类型, 光合有效辐射PAR是影响光合速率的主要环境因子, 而对蒸腾速率影响最大的是气孔导度Gs; 常宗强等(2006)发现在胡杨生长季期间, 阳生叶的光合速率日变化具有明显的光合午休现象, 而阴生叶则是呈现单峰曲线变化; 王海珍等(2009)对塔里木盆地的胡杨研究发现光合速率和蒸腾速率的日变化均是单峰曲线。光合作用和植物的生存环境密切相关, 而且是一个及其复杂的生理过程, 受到植物本身生理特性和外界环境因子的影响, 其中光照、 水分、 CO2浓度、 温度等都是影响光合速率的重要因素(吴芹等, 2013; Xu et al, 2016; 张绪成等, 2011)。植物光合作用的强弱对其生长和和抗逆性具有十分重要的影响, 因此, 常常将植物光合速率的大小作为判断植物生长和抗逆性强弱的指标。虽然现在已经有学者对胡杨的光合速率日变化和季节变化的特征进行过相关研究, 但是对胡杨光合速率、 蒸腾速率与气象环境因子的相关分析以及对胡杨光合速率气孔限制值的研究还比较少。因此, 本研究旨在弄清胡杨净光合速率与气孔导度的日变化规律, 不同季节影响胡杨光合速率以及蒸腾速率的环境因子, 胡杨气孔限制值与光合速率和蒸腾速率的关系。

2 实验材料和方法介绍

2.1 研究区概况

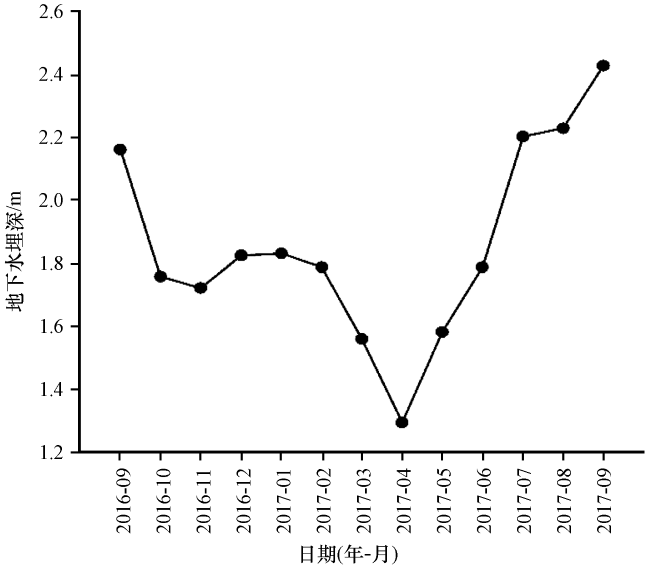
本实验研究区位于内蒙古自治区阿拉善盟额济纳旗阿拉善荒漠生态水文实验研究站附近, 地理坐标为(42°02′00.07″N, 101°02′59.41″E)。该地区地处中国西北内陆, 气候极端干旱少雨, 日照充足, 昼夜温差大且风沙多, 是典型的大陆性气候。多年平均气温8.2 ℃, 极端最低温度-37.6 ℃, 极端最高温达43.1 ℃; 多年平均降水量仅为37.9 mm, 降水集中在每年的6 -8月, 年最大降水量为64 mm, 最小降水量为7 mm; 该区蒸发强烈, 年平均蒸发量高达3505.7 mm, 年最高蒸发量4383.4 mm, 蒸发量是降水量的100倍, 是我国最干旱的地区之一(张经天等, 2019)。该地区的胡杨林大都分布在河道周围及其附近, 并且胡杨群落随着不同时期河道的变迁而变化, 总体上胡杨群落组成结构简单, 物种多样性低, 容易受到人类活动和环境变化的影响。研究区2016年9月至2017年9月的地下水埋深月变化如图1所示, 该区域在17年生长季期间地下水埋深范围在1.58~2.42 m, 平均地下水埋深为2.04 m。乔木层主要是以胡杨为主, 伴生有沙枣(Elaeag nusangastif Olia)和柽柳(Tamarix ramosissima), 林下植被主要有芦苇(Phragmites communis)、 芨芨草(Achnatherum spenldens)、 苦豆子(Sophana alopecuroides)、 甘草(Glyc yrrhizauralensis)、 苏枸杞(Iycium ruthenicum)等荒漠化或盐渍化多年生植物。
图1 2016年9月至2017年9月研究区地下水埋深变化

Fig.1 The variation of groundwater depth at research area from September 2016 to September 2017

2.2 实验材料

实验于2017年6月在阿拉善荒漠生态水文实验研究站进行, 根据实验站附近胡杨群落的分布特点, 在距离河岸1000 m处的胡杨集中分布区建立样地, 并且在胡杨样地内选取3株长势良好, 冠形匀称, 树干通直, 树皮光滑, 无病虫害、 无严重枯枝现象的胡杨作为实验材料。同时将这三株胡杨进行标记, 依次编号为a、 b、 c, 样树的生物学参数见表1
表1 胡杨样树生物学参数

Table 1 Parameters of measured samples Populus euphratica trees

编号 胸径/cm 树高/m 投影面积/m2
a 41.55 9.85 38.66
b 46.28 11.63 46.79
c 52.69 10.02 50.23

2.3 测定项目和方法介绍

光合生理参数的测定: 于2017年6月、 7月、 8月和9月的中旬, 选择晴朗无风无云的天气条件下对胡杨叶片气体交换参数进行活体测定, 每次测定连续3天, 若中途遇见恶劣天气状况, 则顺势推延至下一天。每次观测的时间从08:00(北京时, 下同) -20:00(根据每天日出和日落的时间对测量时间进行微调)每小时测定一次。选取数据采集状况最好的一天进行分析。
测定方法: 利用美国LI-COR公司生产的LI-6400便携式光合作用仪(Li-cor, Inc., USA)测定胡杨叶片光合生理参数的日变化。主要获取的生理指标有: 净光合速率(Pn, 单位: µmolCO2·m-2·s-1)、 气孔导度(Gs, 单位: molH2O·m-2·s-1)、 胞间CO2浓度(Ci, 单位: µmolCO2·mol-1)和蒸腾速率(Tr, 单位: mmolH2O·m-2·s-1); 气象参数指标包括: 光合有效辐射(PAR, 单位: µmol·m-2·s-1)、 大气温度(T air, 单位: ℃)、 空气相对湿度(RH, 单位: %)、 大气CO2浓度(Ca, 单位: µmolCO2·mol-1)和叶气饱和水汽压差(Vpd, 单位: kPa)。观测前将胡杨冠层下方的圆周以90°划分, 然后选取四个不同方位枝条上的三个健康叶片并做好标记, 最后利用自制脚手架将LI-6400光合作用仪固定在距离待测叶片最近的位置处。

2.4 气孔限制值

光合作用的气孔限制是植物在受到外界环境的影响下, 叶片的气孔部分或者全部关闭, 气孔导度下降, 从而使得CO2进入叶片表皮细胞的阻力增大, 细胞胞间CO2浓度(Ci)降低而导致的植物净光合速率下降的过程。光合作用气孔限制可以用气孔限制值Ls来表示。
气孔限制值的计算根据Berry和Downton(1982)提出的气孔限制值公式:
L s = 1 - C i / C a,
式中: Ls为气孔限制值; Ci为细胞间CO2浓度(单位: µmolCO2·mol-1); Ca为大气CO2浓度(单位: µmolCO2·mol-1)。

2.5 统计方法与数据处理

多元逐步回归分析方法可以从众多的影响因素之间挑选出对因变量Y贡献较大的因子, 利用这些贡献大的因子建立最优回归方程。本文选取VpdRHPART air以及大气CO2浓度作为气象环境自变量, 以光合生理参数包括胡杨PnGsTr做为因变量进行多元逐步回归分析, 并且得到最优回归方程。由于数据不在同一个数量级, 因此对所有数据进行Z-score标准化处理。
Z i j = ( X i j - X i ) / S i,
式中: Zij表示标准化后的变量值; Xij为实际变量值; Xi为变量的数学期望; Si为变量的标准差。
测定的原始数据处理均采用统计学方法。数据分析利用EXCEL2016, 多元逐步回归分析采用SPSS statistics22软件, 相关性分析和绘图采用R软件, 图形利用Origin2018软件进行绘制。

3 结果与分析

3.1 胡杨光合参数的日变化

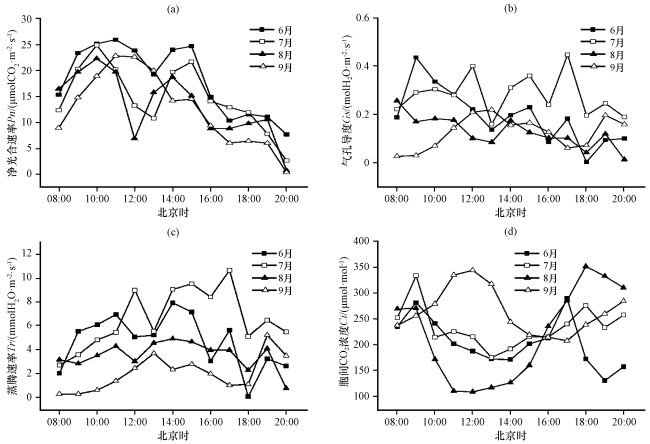
胡杨叶片净光合速率(Pn)的日变化如图2(a)所示, 胡杨Pn的日变化在不同的月呈现大致相同的变化特点。值得注意的是, 除了9月以外, 其他3个月Pn都出现了明显的“光合午休”现象, 而9月则呈现的是Pn先增加后降低的单峰曲线变化特征。7月和8月峰值出现的时间早于9月和6月, 8月最早出现光合午休现象。6月Pn总体较高, 其最大值比7月、 8月和9月分别高了4.05%, 14.01%和12.08%; 平均值则分别高了18.78%, 26.83%和30.41%。
图2 胡杨叶片净光合速率Pn (a)、 气孔导度Gs (b)、 蒸腾速率Tr (c)和胞间CO2浓度Ci (d)的日变化

Fig.2 Daily changes of net photosynthetic rate (a, Pn)、 stomatal conductance (b, Gs)、 transpiration rate (c, Tr) and Intercellular CO2 concentration (d, Ci)

从胡杨叶片气孔导度(Gs)的变化[图2(b)]可以看出, 6月、 7月、 8月和9月平均Gs分别为0.19, 0.28, 0.13和0.12 molH2O·m-2·s-1 。不同季节胡杨的Gs日变化曲线均呈现周期性的波动变化规律, 在09:00 -11:00达到一天中的最大值, 此后变化则开始呈现周期性的波动。7月Gs值最大, 同时波动的幅度也最大, 波动周期除了13:00 -15:00以外, 都在1 h左右; 对9月而言, 气孔导度最小, 波动变化幅度也最小, 08:00 -13:00, 气孔导度一直呈现增加的趋势, 随后则开始降低, 但依旧表现出周期性波动的变化规律, 周期为2 h。
胡杨蒸腾速率(Tr)的日变化[图2(c)]显示, 胡杨在不同季节Tr的总体变化趋势大致相同, 均是从08:00开始呈现上升趋势。在11:00 -13:00, Tr均出现了不同程度的降低, 其中6 -8月的降低幅度明显, 9月的降低幅度则较少。6月最大值为7.92 mmolH2O·m-2·s-1, 最小值为0.03 mmolH2O·m-2·s-1; 7月最大值为10.65 mmolH2O·m-2·s-1, 最小值为2.68 mmolH2O·m-2·s-1; 8月的最大值和最小值分别为4.89和0.75 mmolH2O·m-2·s-1; 9月最大值和最小值分别为5.20和0.03 mmolH2O·m-2·s-1; 各月平均值分别为4.64, 6.58, 3.52和2.01 mmolH2O·m-2·s-1
从胞间CO2浓度Ci的变化[图2(d)]可以看出, 6月、 7月和8月Ci在11:00 -13:00都出现了不同程度的降低, 而9月Ci曲线从08:00开始呈先增加后降低的变化趋势。除此以外, 不同季节的Ci在17:00 -19:00都达到一个相对较高的水平, 然而Ls在17:00 -19:00的时候却处在一个相对比较低的水平。

3.2 胡杨叶片气孔限制值的日变化

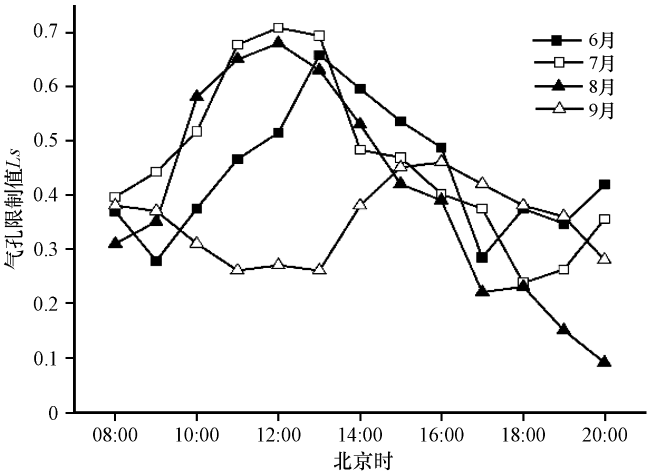
从胡杨气孔限制值(Ls)的日变化(图3)可以看出, 胡杨Ls在6月、 7月和8月都呈先增加后降低的变化趋势, 在12:00左右达到一天中的最大值, 然后开始降低, 到17:00开始, 6月和7月的Ls都开始增加, 而8月和9月则没有出现增加的现象。9月Ls从08:00开始出现在降低, 在12:00左右达到最小值, 然后开始上升, 在16:00达到最大值, 16:00以后, Ls开始逐渐降低。
图3 胡杨气孔限制值(Ls)的日变化

Fig.3 Daily changes of stomatic limitation value (Ls)

3.3 环境因子对胡杨光合生理参数的影响

从环境因子与光合生理参数之间的相关系数(表2)中可以明显的看出, 除了8月以外, Pn与PAR都呈极显著的相关关系, 其中6月和9月的相关系数分别为0.96和0.95, 而7月和8月的相关系数则相对较小。除此以外, 与Pn相关性显著的还有大气CO2浓度和RH, 但是总的来说, 不同月份, 与Pn相关性高的环境因子各不相同。6月、 7月和8月RHGs的相关性显著, 但是9月的相关性却不高。除此以外, T air和大气CO2浓度与Gs也存在显著的相关关系。与Tr具有显著相关性的环境因子有T airPAR和大气CO2浓度, 但是不同月份影响Tr的主要环境因子各不相同。
表2 不同月份胡杨光合生理参数与环境因子之间的相关系数

Table 2 Pearson s correlation coefficients between gas exchange parameters and environmental factors of Populus euphratica in different month

月份 变量 Pn Gs Ci Tr Vpd PAR T air RH Ca
6月 Pn 1 0.65* 0.26 0.73** -0.26 0.96*** -0.21 0.25 0.38
Gs 1 0.39 0.66** -0.69** 0.63** -0.56* 0.69** 0.18
Ci 1 -0.18 -0.26 0.15 -0.46 0.12 0.62*
Tr 1 -0.13 0.66* 0.06 0.19 0.16
Vpd 1 -0.19 0.90*** -0.93*** 0.07
PAR 1 -0.21 0.14 0.44
T air 1 -0.71** 0.26
RH 1 -0.35
Ca 1
7月 Pn 1 0.43 -0.92*** 0.06 -0.4 0.70** -0.15 0.71** -0.96***
Gs 1 -0.14 0.68* -0.23 0.52 0.27 0.81*** -0.56*
Ci 1 0.07 0.15 -0.42 0.09 -0.45 0.87***
Tr 1 0.54* 0.48 0.87*** 0.18 -0.26
Vpd 1 0.06 0.86*** 0.67* 0.24
PAR 1 0.37 0.42 -0.65*
T air 1 -0.26 -0.35
RH 1 -0.72**
Ca 1
8月 Pn 1 0.78** -0.87*** 0.56* -0.69** -0.24 -0.31 0.85*** -0.99***
Gs 1 0.06 0.44 -0.93*** -0.58* -0.61* 0.94*** -0.76**
Ci 1 -0.26 -0.14 -0.31 -0.25 -0.11 0.51
Tr 1 -0.34 -0.33 0.41 0.55* -0.61*
Vpd 1 0.75** 0.63* -0.89*** 0.69**
PAR 1 0.23 -0.49 0.27
T air 1 -0.53* 0.26
RH 1 -0.85***
Ca 1
9月 Pn 1 0.31 0.67* -0.14 -0.61* 0.95*** -0.29 0.92*** -0.91***
Gs 1 0.51 0.87*** 0.55* 0.22 0.73** 0.13 -0.41
Ci 1 0.22 -0.18 0.71*** -0.04 0.39 -0.68*
Tr 1 0.87*** -0.17 0.81*** -0.45 -0.04
Vpd 1 -0.61* 0.81*** -0.81*** 0.40
PAR 1 -0.37 0.85*** -0.91***
T air 1 -0.44 0.07
RH 1 -0.79**
Ca 1

******分别表示P<0.05, P<0.01和P<0.001

根据胡杨光合生理参数与环境因子之间的最优回归方程(表3)可以看出, 6月和9月影响Pn的主要环境因子为PAR, 7月和8月主要是大气CO2浓度和T air。不同月份影响Gs的环境因子各不相同, 主要是VpdRHT air。主要影响Tr的环境因子是T air、 大气CO2浓度和Vpd
表3 胡杨光合生理参数与环境因子的最优回归方程

Table 3 Optimal regression equation of photosynthetic physiological parameters and environmental factors

光合生理参数 月份 最优回归方程 R 2 显著性水平
Pn

6月

7月

8月

9月

Pn=7.271+0.009PAR

Pn=91.157-0.21Ca-0.221T air

Pn=68.677-0.165Ca-0.114T air

Pn=32.946+0.006PAR+0.699RH+3.96Vpd

0.962

0.973

0.998

0.959

P<0.001

P <0.001

P <0.001

P <0.001

Gs

6月

7月

8月

9月

Gs=0.52+0.724RH+0.556Ca

Gs=-1.369+0.016RH+0.1T air+0.001Ca

Gs=-0.238-0.032Vpd

Gs=-0.288+0.016T air+0.069PAR

0.783

0.975

0.772

0.897

P =0.009

P <0.001

P <0.008

P <0.001

Tr

6月

7月

8月

9月

Tr=452.963-9.296T air

Tr=-331.913+1.704Ca

Tr=-18.22+0.006Ca+0.422T air+0.116RH

Tr=-4.104+3.63Vpd+0.002PAR

0.661

0.867

0.995

0.976

P =0.014

P <0.001

P <0.001

P <0.001

4 讨论

植物的光合作用受到气孔和非气孔因素的限制(王孝威等, 2003; 高彦萍等, 2007), 外界环境对植物光合生理指标的影响随着植物的种类的变化而变化。由于胡杨生活在极端干旱的环境中, 因此胡杨的光合生理指标对外界环境的变化十分敏感。在本研究中, 不同季节胡杨Pn的日变化在总体上都呈现先增加后降低的变化趋势, 但是, 除了9月以外, 6 -8月Pn的日变化都呈双峰曲线, 出现了明显的光合午休现象。从分析结果来看, 6月和9月胡杨PnPAR的相关性很高, 究其原因, 可能是中午光照强度过高, 限制了胡杨叶片的光合作用, 这一结果与Bertamini et al (2003)对葡萄的研究结果一致。Singh et al (1996)对杨树的研究发现后认为, 光合作用的变化会对应温度和辐射强度的变化。额济纳旗7、 8月气温大幅度升高, 因此, 7 -8月胡杨出现光合午休的原因可能是温度和光照强度的影响。除此以外, 长时间的光合有效辐射(Correia et al, 1990), Vpd的增加(Pathre et al, 1998), 糖类物质的积累(Chaumont et al, 1994)也有可能是导致光合午休的原因。
植物光合速率降低的因素有气孔的部分关闭和叶肉细胞光合活性的下降两类(许大全, 1997), 而引起胡杨光合午休的因素很多, 其中最主要的因素是: (1)到11:00 -13:00, 大气温度一般为最高, 这个时候高温引起叶片的羧化效率下降, 造成光合速率下降; (2)由于11:00 -13:00缺水而引起的局部水分胁迫和叶片的气孔导度降低。气孔的部分关闭会导致细胞间CO2浓度(Ci)降低, 而叶肉细胞光合活性的下降则会导致Ci上升。根据Farquhar et al(1982)的观点, 判断植物光合作用的气孔限制需要气孔限制值(Ls)增大和Ci减少这两个条件同时发生。若只是Ls减小, 但是Ci值增大或者维持不变则不能说明是气孔限制, 非气孔限制也有可能存在。在本研究中, 除了9月以外, 6月、 7月和8月的Ls基本呈先增加后降低的趋势, 在12:00左右达到最大值, 之后呈降低变化, 而9月Ls呈现的是先降低再增加的变化趋势; 同时从Ci的变化趋势可以看出, 在11:00 -13:00, 6 -8月Ci值都出现了明显的降低。植物叶片的Ci的大小取决于外界大气CO2向叶肉细胞的扩散速率和胞间CO2向叶绿体内的扩撒速率。在各个观测日的上午时段, 由于净光合速率的不断增加, 叶绿体消耗CO2的速率加快, 此时细胞间的CO2向叶绿体内的扩散速率也随之加快。从图2可以看出, 从早上开始到中午时段Ls值在不断的增大, 因此可以推断, 在这个时间段, Ci减小的幅度一定比大气CO2浓度减小的幅度更大。而在下午时段, Ls呈下降趋势, 且气孔导度(Gs)也出现了不同程度的增加, 说明在这个时间段, Ci不是限制光合速率降低的因素。因此可以推测, 6 -8月胡杨出现光合午休的原因是由于气孔的部分关闭导致的气孔导度下降, 胞间CO2浓度减小, 属于光合作用的气孔限制。而下午时段Ls减小, 且Ci都有不同程度的增加, 说明此时非气孔因素主要限制了胡杨的光合速率; 除此以外, 下午PAR、 空气温度(T air)逐渐降低导致胡杨叶片的同化能力逐渐减弱, 因此也可以推断在这个时间段光合速率的降低是以非气孔限制为主, 但是并不能将气孔限制除外, 仅用Ls来分析光合作用的气孔限制存在着一些弊端(许大全, 1997)。研究表明, 影响植物光合作用的非气孔因素有很多, 包括叶绿体组成结构发生变化、 植物膜系统和光合电子传递系统受到损伤、 与光合作用有关的色素严重降解以及各种酶活性的降低等, 均可引起光合速率降低(冀宪领等, 2004)。
从分析结果来看, 导致Gs下降的环境因子主要是RHVpdT air, 这一结果与司建华等(2008)对胡杨气孔导度的研究结果基本一致。高温会导致蒸腾作用过强, 保卫细胞失水而气孔关闭, 较高的Vpd同样也会导致较大程度的蒸腾作用, 致使叶片水分的大量散失, 气孔导度降低, 光合作用所需的CO2浓度降低, 因此净光合速率下降(陈根云等, 2010)。气孔导度与空气相对湿度呈现的均是正相关关系, 说明胡杨的气孔导度随着空气相对湿度的增加而增加, 原因是在空气相对湿度较大的时候, 叶气饱和水汽压差较小, 叶片的蒸腾速率也相对较低, 此时气孔导度也会相对较大。Farquhar et al(1982)许大全(1995)认为, 气孔是叶片蒸腾和光合原料CO2进入细胞的通道, 其行为与植物叶片的蒸腾和光合作用能力有着密切的联系。从净光合速率(Pn)与气孔导度(Gs)的关系来看, 不同植物之间PnGs的响应模式不同。Yu et al(2009)对在田间生长的不同品种的葡萄研究发现, PnGs呈曲线相关; Anev et al(2016)对干旱处理后的亚高山松幼苗研究后发现, PnGs之间呈线性相关的关系; 倪惠菁等(2016)通过对不同季节不同品种切花红掌光合特性的研究发现, PnGs呈正相关关系; 杨泽粟等(2015)对干旱区的春小麦研究发现, PnGs之间的关系曲线为对数曲线。以上研究结果均表明植物的净光合速率Pn随着Gs的增大而增大, 与本文对不同季节胡杨叶片的PnGs的研究结果相同, 由于所处的环境差异和植物种类不同, 因此具体拟合的曲线存在差异。
胡杨净光合速率的增加伴随着气孔导度的增加, 气孔导度的增加则又会导致蒸腾速率的增加, 由于胡杨生长在极端干旱的荒漠地带, 因此平衡好光合速率和蒸腾速率之间的关系成为了胡杨生存的必要条件。从胡杨净光合速率、 蒸腾速率和气孔导度的日变化曲线可以看出, 气孔导度的周期性波动是胡杨适应干旱条件的一种调节机制, 当光合速率较小时, 气孔导度则增加, 当蒸腾速率过高时, 气孔导度则减小, 从而调整光合作用对CO2吸收和蒸腾作用对水分散失之间的矛盾。

5 结论

基于2017年6 -9月额济纳旗胡杨林叶片的实测光合生理参数数据, 对胡杨的净光合速率、 蒸腾速率和气孔导度的变化特征进行了分析, 同时分析了胡杨光合生理参数与环境因子间的关系, 分析了影响胡杨光合生理的主要环境因子, 并进一步探究了胡杨气孔限制值的变化特征与胡杨午间光合速率下降的限制因素, 得出主要结论如下:
(1) 荒漠河岸林胡杨的净光合速率的日变化基本呈先增加后降低的变化趋势, 6 -8月出现了明显的光合午休现象, 其限制因素主要是光合作用的气孔限制; 下午时段胡杨光合速率的下降主要限制因素是非气孔限制。
(2) 胡杨光合午休的主要原因是气孔的关闭而导致的胞间CO2浓度下降, 影响气孔导度下降的主要环境因子是净光合辐射、 饱和水汽压差和大气温度。
(3) 胡杨气孔导度的日变化呈周期性波动, 这是胡杨适应极端干旱条件的一种调节机制, 目的是调整光合作用对CO2的吸收与蒸腾作用对水分散失之间的矛盾。
Arshad I, Wang T X, Wu G D, al et, 2017.Physiological and transcriptome analysis of heteromorphic leaves and hydrophilic roots in response to soil drying in desert Populus euphratica[J].Scientific Reports, 7(1): 12188.

Anev S, Marinova A, Tzvetkova N P, al et, 2016.Stomatal control on photosynthesis in drought-treated subalpine pine saplings[J].Genetics and Plant Physiology, 6(1): 43-53.

Berry J A, Downton W J S, 1982.Environmental regulation of photosynthesis[M].New York: Academic Press, 263-343.

Bertamini M, Nedunchezhian N, 2003.Photoinhibition and recovery of photosystem in Grapevine (Vitis vinifera L.) leaves grown under field conditions[J].Photosynthetica, 41(4): 611-617.

Chaumont M, Morotgaudry J F, Foyer C H, 1994.Seasonal and diurnal changes in photosynthesis and carbon partitioning in Vitis vinifera leaves in vines withand without fruit[J].Journal of Experimental Botany, 45(9): 1235-1243.

Correia M J, Chaves M M C, Pereira J S, 1990.Afternoon depression in photosynthesis in Grapevine leaves—evidence for a high light stress effect[J].Journal of Experimental Botany, 41(4): 417-426.

Farquhar G D, Sharkey T D, 1982.Stomatal conductance and photosynthesis[J].Annual Review of Plant Physiology, 33(1): 317-345.

Pathre U, Sinha A K, Shirke P A, al et, 1998.Factors determining the midday depression of photosynthesis in trees under monsoon climate[J].Trees, 12(8): 472-481.

Singh M, Chaturvedi R, Sane P V, 1996.Diurnal and seasonal photosynthetic characteristics of Populus deltoides Marsh.leaves[J].Photosynthetica, 32(1): 11-21.

Valdes A E, Centeno M L, Espinel S, al et, 2002.Could plant hormones be the basis of maturation indices in Pinus radiata?[J].Plant Physiology and Biochemistry, 40(3): 211-216.

Xu Y, Ibrahim I M, Harvey P J, 2016.The influence of photoperiod and light intensity on the growth and photosynthesis of Dunaliella salina (chlorophyta) CCAP 19/30[J].Plant Physiology and Biochemistry, 106: 305-315.

Yu D J, Kim S J, Lee H J, 2009.Stomatal and non-stomatal limitations to photosynthesis in field-grown Grapevine cultivars[J].Biologia Plantarum, 53(1): 133-137.

Zhao C Y, Si J H, Feng Q, al et, 2017a.Physiological response to salinity stress and tolerance mechanics of Populus euphratica[J].Environmental Monitoring and Assessment, 189(11): 533.

Zhao C Y, Si J H, Feng Q, al et, 2017b.Comparative study of daytime and nighttime sap flow of Populus euphratica[J].Plant Growth Regulation, 82(2): 353-362.

常宗强, 冯起, 苏永红, 等, 2006.额济纳绿洲胡杨的光合特征及其对光强和CO2浓度的响应[J].干旱区地理, 29(4): 496-502.

陈根云, 陈娟, 许大全, 2010.关于净光合速率和胞间CO2浓度关系的思考[J].植物生理学通讯, 46: 64-66.

杜占池, 杨宗贵, 崔骁勇, 1999.草原植物光合生理生态研究[J].中国草地, (3): 20-27.

付爱红, 陈亚宁, 李卫红, 等, 2004.新疆塔里木河下游不同地下水位的胡杨水势变化分析[J].干旱区地理, 27(2): 207-211.

高冠龙, 冯起, 张小由, 等, 2018.黑河下游影响荒漠河岸胡杨林蒸腾的冠层与大气耦合分析[J].高原气象, 37(1): 237-239.DOI: 10.7522/j.issn.1000-0534.2017.00017.

高彦萍, 冯莹, 马志军, 等, 2007.水分胁迫下不同抗旱类型大豆叶片气孔特性变化研究[J].干旱地区农业研究, 25(2): 77-79.

冀宪领, 盖英萍, 牟志美, 等, 2004, 干旱胁迫对桑树生理生化特性的影响[J].蚕业科学, 30(2): 117-122.

贾立, 王介民, 刘巍, 1994.黑河试验区春小麦田间的环境因子对蒸腾和光合作用的影响[J].高原气象, 13(3): 136-145.

刘树宝, 陈亚宁, 李卫红, 等, 2014.黑河下游不同林龄胡杨水分来源的D、 18O同位素示踪[J].干旱区地理, 37(5): 988-995.

倪惠菁, 臧德奎, 郭先锋, 等, 2016.不同季节不同品种切花红掌光合特性比较研究[J].中国农学通报, 32(31): 90-97.

司建华, 常宗强, 苏永红, 等, 2008.胡杨叶片气孔导度特征及其对环境因子的响应[J].西北植物学报, 28(1): 125-130.

王海珍, 韩路, 李志军, 2009.胡杨、 灰叶胡杨蒸腾耗水规律初步研究[J].干旱区资源与环境, 23(8): 186-189.

王利界, 周智彬, 常青, 等, 2018.盐旱交叉胁迫对灰胡杨(Populus pruinosa)幼苗生长和生理生化特性的影响[J].生态学报, 38(19): 7026-7033.

王孝威, 段艳红, 曹慧, 2003.水分胁迫对短枝型果树光合作用的非气孔限制[J].西北植物学报, 23(8): 1609-1613.

王玉萍, 高会会, 刘悦善, 2013.高山植物光合机构耐受胁迫的适应机制[J].应用生态学报, 24(7): 2049-2055.

王仲礼, 赵雪, 刘林德, 等, 2015.胡杨(Populus euphratica)和沙枣(Elaeagnus angustifolia)对荒漠环境的适应性比较[J].中国沙漠, 35(1): 160-166.

乌日汗, 2005.额济纳胡杨光合和水分生理特性的研究[D].呼和浩特: 内蒙古农业大学, 1-27.

吴芹, 张光灿, 裴斌, 等, 2013.不同土壤水分下山杏光合作用CO2响应过程及其模拟[J].应用生态学报, 24(6): 1517-1524.

夏振华, 陈亚宁, 朱成刚, 等, 2018.干旱胁迫环境下的胡杨叶片气孔变化[J].干旱区研究, 35(5): 1111-1117.

许大全, 1995.气孔的不均匀关闭与光合作用的非气孔限制[J].植物生理学报, 31(4): 246-252.

许大全, 1997.光合作用气孔限制分析中的一些问题[J].植物生理学通讯, 33(4): 241-244.

杨泽粟, 张强, 郝小翠, 2015.自然条件下半干旱雨养春小麦生育后期旗叶光合的气孔和非气孔限制[J].中国生态农业学报, 23(2): 174-182.

张经天, 席海洋, 王春林, 等, 2019.基于地下水位变化的荒漠河岸林蒸散估算[J].高原气象, 38(1): 179-186.DOI: 10.7522/j.issn.1000-0534.2018.00071.

张新慧, 张恩和, 2008.当归叶片光合参数日变化及其与环境因子的关系[J].西北植物学报, 28(11): 2314-2319.

张绪成, 于显枫, 马一凡, 2011.施氮和大气CO2浓度升高对小麦旗叶光合电子传递和分配的影响[J].应用生态学报, 22(3): 673-680.

周洪华, 陈亚宁, 李卫红, 等, 2008.塔里木河下游胡杨气体交换特性及其环境解释[J].中国沙漠, 28(4): 665-672.

庄丽, 陈亚宁, 李卫红, 等, 2005.干旱区荒漠植被丙二醛及保护酶活性对地下水位的响应[J].冰川冻土, 27(5): 723-733.

Outlines

/